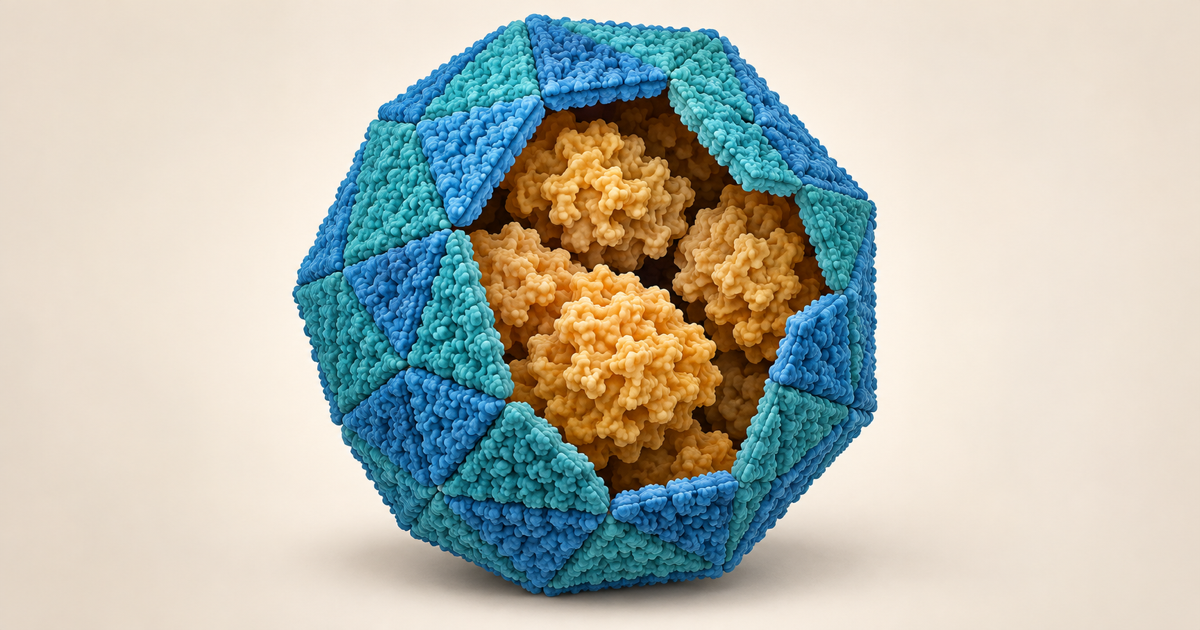
Un cianobatterio può disporre di energia luminosa e incontrare comunque una difficoltà: fornire abbastanza anidride carbonica all'enzima che la incorpora nella materia organica. La quantità di carbonio presente nell'acqua non coincide infatti con quella immediatamente utilizzabile da Rubisco. Contano la forma chimica, il trasporto e il luogo nel quale avviene la reazione.
L'evoluzione della fissazione del carbonio riguarda perciò più trasformazioni collegate: una rete di reazioni capace di rinnovare i propri intermedi, un enzima dalla storia complessa e un'organizzazione cellulare che ne modifica le condizioni di lavoro.
Un ciclo richiede che l'accettore venga rigenerato
Nel ciclo di Calvin–Benson–Bassham, Rubisco incorpora una molecola di CO₂ nel ribulosio-1,5-bisfosfato, o RuBP, formato da cinque atomi di carbonio. Il prodotto iniziale si scinde in due molecole di 3-fosfoglicerato. Passaggi successivi impiegano ATP e NADPH per ottenere triosi fosfati; una parte del carbonio può alimentare le biosintesi, mentre il resto serve a rigenerare l'accettore.
La fosforibulochinasi, abbreviata PRK, completa la rigenerazione trasformando il ribulosio-5-fosfato in RuBP con consumo di ATP. Senza questo ritorno all'accettore, l'incorporazione iniziale esaurirebbe la propria materia di partenza. Nel bilancio canonico, fissare tre CO₂ e ottenere un trioso fosfato netto richiede nove ATP e sei NADPH: un costo che non comprende il trasporto del carbonio e tutte le altre spese della cellula.
Per ricostruire l'evoluzione della via bisogna quindi seguire sia l'ingresso del carbonio sia il mantenimento del circuito. Trovare un gene di Rubisco non basta a dimostrare che un organismo possieda e utilizzi un ciclo completo.
La storia dell'enzima attraversa quella della via metabolica
Rubisco appartiene a una famiglia più diversificata delle forme comunemente presentate nei diagrammi della fotosintesi. Uno studio del 2026 ha combinato filogenesi e caratterizzazione biochimica di varianti poco esplorate, trovando numerose forme dimeriche in rami profondi della superfamiglia. Il risultato sostiene un'origine dimerica; non equivale all'osservazione diretta dell'enzima ancestrale. Inoltre, diverse Rubisco partecipano a contesti metabolici che non coincidono con il ciclo di Calvin.
Anche i geni di una via completa possono avere provenienze differenti. Nel batterio simbionte «Candidatus Thiobarba», un lavoro pubblicato online nel 2019 ha ricostruito acquisizioni multiple di geni del ciclo; espressione e firme isotopiche ne sostengono l'impiego. Questo caso, esterno ai cianobatteri, mostra concretamente come si possa formare una combinazione metabolica attraverso contributi genetici diversi. Non identifica però l'origine del primo ciclo cianobatterico.
La ricostruzione richiesta per i Cyanobacteria deve perciò confrontare le genealogie dei singoli enzimi e verificare come siano state integrate nella fisiologia cellulare. La distribuzione moderna del ciclo non restituisce da sola una sequenza unica delle sue acquisizioni.
Rubisco cambia anche attraverso i suoi partner
Le Rubisco di forma I caratteristiche dei sistemi qui considerati possiedono grandi subunità catalitiche e piccole subunità associate. Queste ultime possono modificare il comportamento dell'intero complesso.
Nel 2022, ricostruzioni di sequenze ancestrali seguite da analisi strutturali e biochimiche hanno mostrato che l'acquisizione della piccola subunità permise di aumentare la specificità per la CO₂ e l'efficienza della carbossilazione. Nella ricostruzione proposta, il cambiamento precedeva l'ossigenazione atmosferica: un vantaggio successivamente rilevante in presenza di ossigeno poteva dunque emergere in un contesto precedente.
L'esperimento collega cambiamenti nelle interazioni proteiche a conseguenze misurabili sulla catalisi. La cronologia profonda rimane invece un'inferenza. Non basta osservare l'utilità attuale di una proprietà per stabilire quale pressione selettiva ne abbia determinato la prima comparsa.
Il carbonio viene concentrato attraverso un circuito cellulare
Rubisco può reagire anche con l'ossigeno, producendo un esito diverso dalla carbossilazione. La disponibilità dei substrati e la specificità dell'enzima influiscono sul risultato.
Il circuito accumula bicarbonato, HCO₃⁻, nel citoplasma; nel carbossisoma un'anidrasi carbonica ne favorisce la conversione in CO₂, utilizzata da Rubisco. È il meccanismo di concentrazione del carbonio, spesso indicato con la sigla inglese CCM. Le sue componenti cooperano: il compartimento svolge una funzione all'interno di un sistema più ampio.
Il carbossisoma ha un involucro proteico e ospita il passaggio di fissazione catalizzato da Rubisco; non racchiude l'intero ciclo. L'organizzazione interna può variare: la crio-tomografia elettronica ha mostrato disposizioni differenti di Rubisco in due α-carbossisomi, provenienti da Cyanobium e da Halothiobacillus neapolitanus. La compartimentazione comprende quindi anche il modo in cui gli enzimi vengono distribuiti nello spazio.
Due sistemi, α e β, con componenti differenti
I due tipi principali associano normalmente Rubisco di forma IA agli α-carbossisomi e Rubisco di forma IB ai β-carbossisomi. La nomenclatura distingue sistemi molecolari; non definisce una successione dal meno al più evoluto.
Negli α-carbossisomi, CsoS2 collega l'organizzazione del contenuto enzimatico a quella del guscio. Uno studio del 2023 su involucri ricostituiti ha mostrato come una sua regione attraversi più interfacce fra proteine del rivestimento. La forma del compartimento dipende quindi anche da connessioni distribuite fra i componenti.
Nei β-carbossisomi studiati, un ruolo organizzatore centrale appartiene a CcmM. I suoi moduli legano più complessi di Rubisco e possono promuoverne la condensazione. Le analisi hanno chiarito che questi moduli, pur somigliando alle piccole subunità, non le sostituiscono: stabiliscono altre interazioni con l'enzima.
La capacità di concentrare gli enzimi assume così forme molecolari differenti. Per stabilirne la parentela occorre ricostruire la storia delle proteine coinvolte, oltre a confrontare l'aspetto e la funzione dei compartimenti.
Come può essere vantaggioso un sistema ancora incompleto?
Un sistema moderno può dipendere da molti componenti. Questa dipendenza non implica che tutti dovessero comparire insieme: il vantaggio di una combinazione cambia con l'ambiente.
Flamholz e collaboratori hanno affrontato il problema ricostituendo componenti di un CCM batterico in Escherichia coli e confrontando sistemi parziali a diverse concentrazioni di CO₂. In condizioni intermedie, intorno all'1%, alcune combinazioni dotate di anidrasi carbonica o di capacità di acquisizione del carbonio crescevano meglio dei controlli. Osservazioni in due batteri autotrofi e un modello fisiologico hanno rafforzato l'interpretazione.
Lo studio individua una traiettoria possibile: componenti inizialmente utili a soddisfare il fabbisogno di carbonio inorganico possono precedere il sistema completo. Non dimostra che questa sia stata la successione effettiva in ogni linea cianobatterica e non fornisce una data di nascita dei carbossisomi.
Un compartimento permeabile e regolato
Il guscio viene talvolta immaginato come un contenitore che lascia entrare bicarbonato e blocca completamente i gas. Il suo comportamento è più complesso. Simulazioni atomistiche pubblicate nel 2024, condotte su un guscio β sintetico semplificato, hanno rilevato percorsi di attraversamento anche per CO₂ e O₂, comprese interfacce fra proteine. I risultati riguardano il modello analizzato e non misurano direttamente ogni carbossisoma naturale.
Anche la produzione interna di CO₂ può essere regolata. In Cyanobium sp. PCC 7001, il RuBP attiva allostericamente l'anidrasi carbonica CsoSCA: il substrato utilizzato da Rubisco influisce dunque sull'enzima che le fornisce CO₂. Questo collegamento documenta un ulteriore livello di coordinamento, da non estendere automaticamente a tutti i sistemi α e β.
Che cosa possiamo ricostruire
Gli esperimenti consentono di misurare attività enzimatiche, interazioni, organizzazione dei compartimenti e vantaggi fisiologici in condizioni definite. Le filogenesi permettono di proporre come alcune caratteristiche si siano distribuite e trasformate. Rimangono meno determinate la sequenza completa degli eventi più antichi e la loro collocazione temporale.
Per la mappa evolutiva dei Cyanobacteria, il passaggio decisivo consiste nel seguire insieme questi cambiamenti senza comprimerli in un'unica invenzione. Il riciclo degli intermedi mantiene la via metabolica; le interazioni proteiche modificano Rubisco; trasporto, compartimentazione e regolazione cambiano la disponibilità del suo substrato. È su questa integrazione che oggi poggia la fissazione del carbonio nei sistemi descritti.