Come le cellule costruiscono e mantengono i fotosistemi, e quali tracce molecolari permettono di ricostruirne la storia.
Un fotosistema funzionante richiede più della presenza dei geni che ne codificano le proteine. Occorre produrre i componenti, inserirli nella membrana, associare pigmenti e altri cofattori, stabilizzare gli intermedi e ottenere una configurazione capace di trasferire elettroni. Nel frattempo, le molecole che assorbono luce possono già partecipare a reazioni: la costruzione deve essere compatibile con questa attività chimica.
La parola «assemblaggio» identifica qui due problemi. Il primo riguarda ciò che una cellula compie per costruire un complesso. Il secondo riguarda il modo in cui l'evoluzione ha prodotto l'organizzazione oggi osservabile. Gli esperimenti sul primo problema aiutano a formulare domande sul secondo; la successione dei passaggi cellulari, però, non riproduce automaticamente la successione degli eventi evolutivi.
Due fotosistemi collegati, due nuclei differenti
Nel flusso elettronico lineare, il fotosistema II, o PSII, alimenta il trasferimento di elettroni dall'acqua; il fotosistema I, o PSI, utilizza un'altra eccitazione luminosa per contribuire alla formazione di potere riducente. Tra i due intervengono trasportatori e complessi intermedi. Il loro collegamento funzionale non li trasforma in un unico complesso proteico.
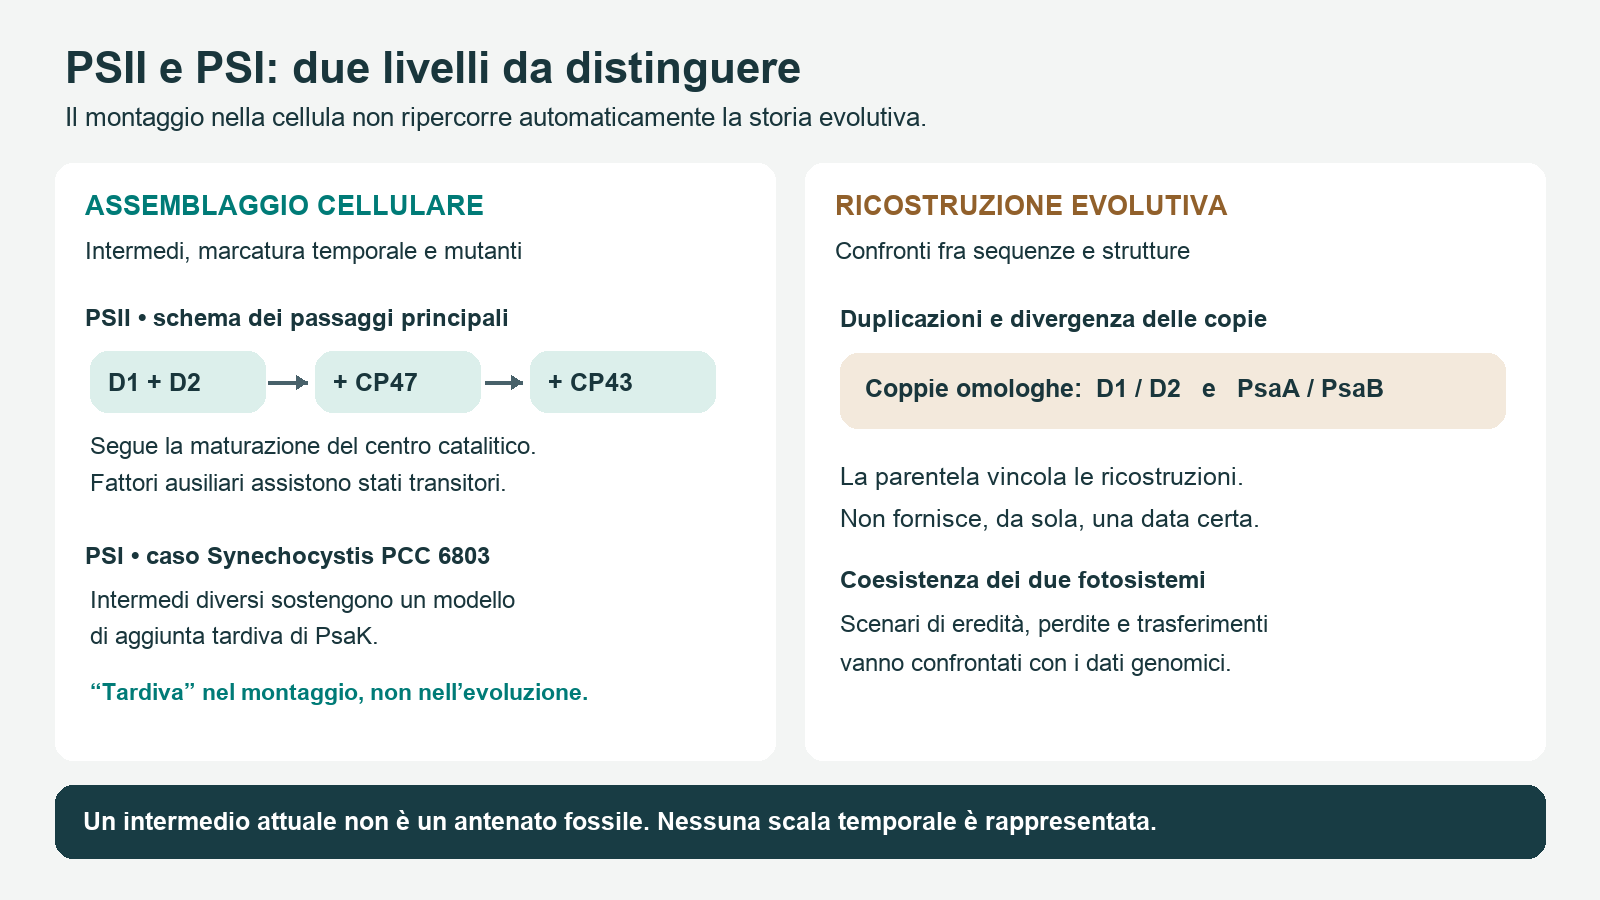
Il nucleo del PSII comprende D1 e D2, due proteine imparentate ma differenti; intorno a esso si dispongono, fra gli altri componenti, le antenne interne CP43 e CP47. Il PSI possiede invece il nucleo PsaA–PsaB. Anche queste due proteine sono omologhe: le somiglianze riflettono un'origine comune. Una coppia di subunità diverse forma un eterodimero.
Questa organizzazione consente di affrontare separatamente due domande: come la cellula associa le subunità e perché l'evoluzione ha conservato coppie affini che si sono differenziate.
Il PSII si costruisce attraverso intermedi
Gli studi sui cianobatteri sostengono un montaggio modulare del PSII. Componenti associati a D1 e D2 formano un centro di reazione iniziale; l'aggiunta del modulo CP47 produce un intermedio chiamato RC47, al quale si associa successivamente CP43. Questo schema riassume passaggi principali, senza rappresentare ogni fattore o ogni possibile variante del processo.
Nel 2023 uno studio strutturale ha mostrato che Ycf48, un fattore ausiliario, occupa in un intermedio precoce la regione destinata a ospitare il centro che ossida l'acqua. Una proteina necessaria durante la costruzione può dunque trovarsi dove, nel complesso maturo, dovrà stabilirsi un'altra organizzazione. Per ottenere attività catalitica, l'intermedio deve ancora cambiare.
Un secondo studio ha caratterizzato un intermedio con Psb27, Psb28 e Psb34. L'associazione di Psb28 modifica il lato del PSII che riceve e trasferisce gli elettroni, compresa la regione del chinone Qᵦ. Gli autori interpretano queste modifiche come parte della protezione del complesso durante l'assemblaggio.
Il valore di queste osservazioni sta nel rendere visibili stati transitori: il sistema in costruzione ha una configurazione propria. I fattori ausiliari non sono necessariamente componenti permanenti del prodotto finale.
Costruire il complesso non basta: occorre mantenerlo
La luce che alimenta il PSII può anche danneggiarlo. La subunità D1 rappresenta un bersaglio importante del fotodanno; il mantenimento dell'attività richiede la rimozione delle proteine compromesse e il loro rimpiazzo.
Esperimenti sulla proteasi FtsH, un enzima che degrada proteine, hanno collegato la selettività della degradazione all'accessibilità dei componenti del PSII. La disposizione delle subunità influisce quindi anche sulla possibilità di raggiungere il materiale da eliminare.
Assemblaggio iniziale e riparazione rispondono a problemi differenti, ma entrambi comportano riorganizzazioni del complesso. Un'immagine del fotosistema maturo mostra una configurazione funzionale; non rende da sola visibile il lavoro necessario per conservarla. La capacità fotosintetica della cellula dipende anche da questa manutenzione.
Il PSI: seguire i componenti mentre entrano nel complesso
Per ricostruire l'assemblaggio del PSI è utile seguire proteine appena sintetizzate e osservare in quali complessi compaiono nel tempo. La tecnica detta pulse–chase introduce una marcatura per un intervallo limitato, poi ne segue la distribuzione durante una fase successiva.
In Synechocystis sp. PCC 6803, uno studio del 2007 ha combinato questa strategia con la separazione dei complessi proteici. Oltre al monomero completo del PSI, i ricercatori hanno individuato una forma priva di PsaK e una forma transitoria priva di PsaL e PsaK. Un mutante nel gene ycf37 presentava differenze negli intermedi e una minore quantità di trimeri.
Su questa base gli autori hanno proposto un modello nel quale PsaK entra in una fase tardiva. La conclusione riguarda il sistema studiato: non autorizza a imporre la stessa sequenza a ogni cianobatterio. Soprattutto, «aggiunta tardi durante il montaggio» non significa «comparsa tardi nell'evoluzione». Sono due tempi differenti, misurati con strumenti differenti.
Le duplicazioni leggibili nelle coppie di proteine
La storia evolutiva viene affrontata confrontando sequenze e strutture. La parentela fra D1 e D2, e quella fra PsaA e PsaB, sostiene ricostruzioni in cui duplicazioni di geni ancestrali furono seguite da divergenza delle copie. La duplicazione rende disponibili due discendenze genetiche che possono accumulare differenze pur conservando parti della struttura originaria.
Per il PSI, il confronto con centri di reazione di tipo I omodimerici — costruiti con due copie dello stesso tipo di subunità — permette di investigare il passaggio a un nucleo eterodimerico. Non implica che un batterio attuale dotato di un centro omodimerico sia l'antenato diretto dei cianobatteri. Ogni organismo vivente possiede una propria storia evolutiva.
Le analisi comparative del PSII esaminano invece le differenze fra i suoi componenti e quelli di altri centri di reazione, cercando di ricostruire quali trasformazioni siano compatibili con l'organizzazione osservata. Le cronologie dipendono dai modelli adottati e non vengono qui convertite in una data certa di nascita dei fotosistemi.
Come arrivarono a coesistere i due sistemi?
La presenza di entrambi i fotosistemi nei cianobatteri pone un problema ulteriore rispetto alle duplicazioni interne a ciascuna famiglia. Occorre ricostruire la distribuzione degli apparati fra le linee batteriche e valutare il ruolo di eredità, perdite e trasferimenti genici.
Un'analisi filogenomica del 2024, estesa a oltre diecimila genomi, ha confrontato la storia dei batteri con quella degli apparati fotosintetici e della fissazione del carbonio. Gli autori propongono una ricostruzione che attribuisce un ruolo rilevante all'eredità ancestrale e alle perdite selettive. È uno scenario sostenuto dai loro confronti, non l'osservazione diretta della prima cellula che possedeva entrambi i sistemi.
La ricostruzione resta aperta a nuovi campionamenti e nuove analisi. Una somiglianza strutturale, un gene assente e una parentela filogenetica vincolano il racconto in modi diversi: nessuno di questi elementi, isolatamente, restituisce l'intera sequenza storica.
L'assemblaggio cellulare può essere indagato seguendo intermedi e componenti; l'evoluzione richiede confronti fra discendenze. Il collegamento più solido fra i due livelli è questo: le strutture ereditate devono poter essere costruite, protette e mantenute. Gli esperimenti mostrano come le cellule attuali soddisfano questi requisiti; i confronti molecolari restringono le storie evolutive compatibili con ciò che osserviamo.