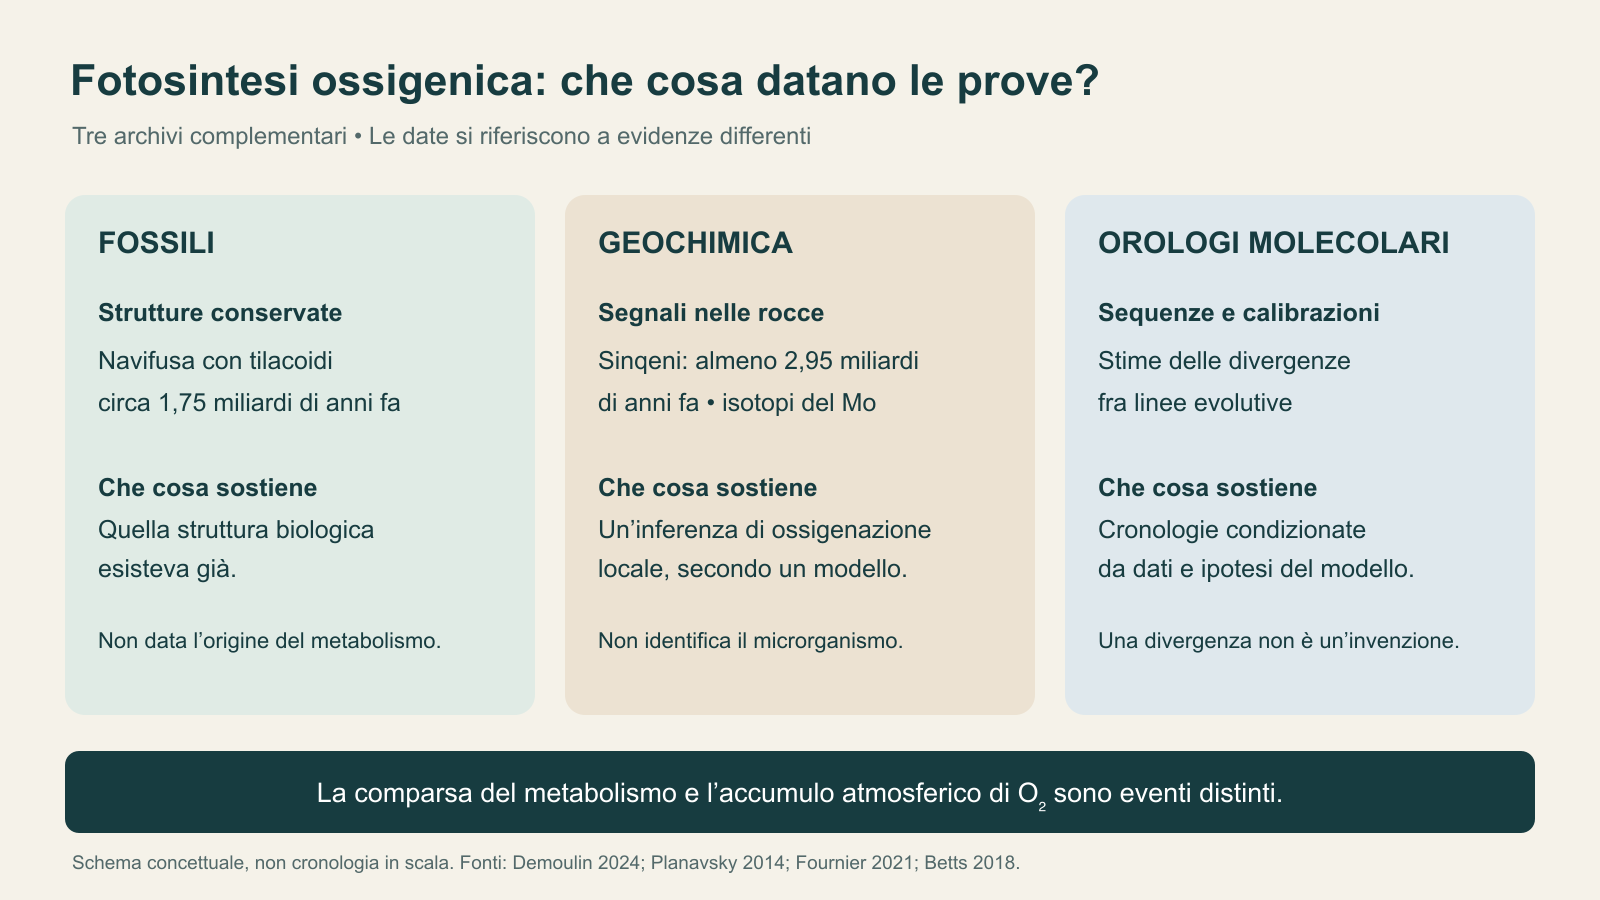
La comparsa della fotosintesi ossigenica non possiede una data direttamente leggibile in una roccia. I sedimenti conservano tracce di ambienti trasformati dall’ossigeno; alcuni fossili preservano strutture cellulari; i genomi permettono di confrontare organismi e ricostruire parentele. Per risalire all’origine di questo metabolismo occorre capire quale domanda possa ricevere risposta da ciascuna testimonianza.
Il problema comincia dalla parola «comparsa». Può indicare l’evoluzione della capacità di produrre ossigeno, la presenza di una comunità che la esercita oppure l’inizio di un cambiamento atmosferico. Sono eventi collegati, ma una data assegnata a uno di essi non si trasferisce automaticamente agli altri.
La novità biologica: estrarre elettroni dall’acqua
Nella fotosintesi ossigenica l’acqua fornisce elettroni e viene ossidata, liberando ossigeno molecolare. La semireazione che descrive questo passaggio è:
2 H₂O → O₂ + 4 H⁺ + 4 e⁻
Il bilancio mostra che una molecola di O₂ corrisponde all’estrazione di quattro elettroni da due molecole d’acqua. Non descrive l’intera fotosintesi: isola la trasformazione che giustifica il termine «ossigenica».
Nel fotosistema II attuale questa chimica dipende da un centro catalitico contenente manganese e calcio, inserito in un complesso proteico. La determinazione della sua struttura ha chiarito l’organizzazione del sistema che ossida l’acqua. Ricostruire come tale sistema si sia evoluto richiede però informazioni ulteriori: osservare il risultato moderno non significa disporre delle sue forme ancestrali.
Per riconoscere l’innovazione nel passato, quindi, trovare una traccia di vita o di utilizzo della luce non basta. Occorre un indizio capace di distinguere la produzione di ossigeno da altre attività microbiche.
Perché una stromatolite non risolve da sola il problema
Le stromatoliti sono strutture sedimentarie laminate nelle quali l’attività microbica può contribuire all’accumulo e alla precipitazione dei minerali. Il confronto con quelle attuali, spesso associate a cianobatteri, invita a riconoscere gli stessi protagonisti negli esempi antichi. Questo passaggio richiede cautela.
Esperimenti con il batterio fototrofo anossigenico Rhodopseudomonas palustris hanno mostrato che anche un organismo che non produce ossigeno mediante fotosintesi può facilitare la formazione di protolamine carbonatiche. Una struttura laminata non identifica dunque, da sola, il metabolismo della comunità che contribuì a costruirla.
L’osservazione sedimentaria rimane preziosa, ma deve essere integrata con altri caratteri. La presenza di microrganismi, il loro ruolo nella deposizione e la capacità di ossidare l’acqua costituiscono conclusioni differenti, ciascuna da sostenere con evidenze adeguate.
Le membrane conservate dentro un fossile
Una testimonianza più specifica proviene dall’interno delle cellule fossili. Nel 2024 sono state descritte membrane interpretate come tilacoidi in esemplari di Navifusa majensis provenienti dalla Formazione McDermott, in Australia, datata fra circa 1,78 e 1,73 miliardi di anni fa.
I tilacoidi ospitano l’apparato fotosintetico in molti cianobatteri attuali. La loro conservazione offre un carattere diagnostico più informativo della sola forma esterna del microrganismo: lo studio sostiene la presenza di cianobatteri dotati di queste membrane intorno a 1,75 miliardi di anni fa.
Questa età stabilisce che quella organizzazione cellulare esisteva già. Non dimostra che si sia originata allora, né che la fotosintesi ossigenica sia iniziata insieme ai tilacoidi. Il genere attuale Gloeobacter, per esempio, svolge fotosintesi ossigenica senza possederli. L’origine del metabolismo e quella di una particolare architettura di membrane restano problemi distinti.
L’ossigeno può lasciare una traccia senza conservare il produttore
Le rocce possono registrare conseguenze chimiche dell’ossigeno anche quando non conservano cellule identificabili. In questo caso si studiano indicatori indiretti, chiamati proxy: proprietà misurabili che permettono di ricostruire condizioni ambientali attraverso un modello.
Uno studio del 2014 ha analizzato gli isotopi del molibdeno in rocce della Formazione Sinqeni, in Sudafrica, formatesi almeno 2,95 miliardi di anni fa. La distribuzione isotopica è stata interpretata come compatibile con interazioni fra molibdeno e ossidi di manganese. Gli autori ne hanno dedotto la presenza di ossigeno in ambienti marini poco profondi, attribuendolo alla fotosintesi ossigenica.
Il risultato è un’argomentazione geochimica a favore di una produzione antica e locale di O₂. Non è l’osservazione diretta di un cianobatterio di quell’età. La forza della conclusione dipende dal collegamento fra il segnale misurato, i processi che possono generarlo e la conservazione della traccia nel tempo.
È proprio questa distinzione a permettere un confronto corretto con i fossili: un indizio ambientale più antico e una struttura cellulare più recente possono aggiungere informazioni diverse alla stessa ricostruzione.
Le sequenze genetiche forniscono cronologie da verificare
Gli orologi molecolari combinano differenze fra sequenze, modelli di evoluzione e calibrazioni temporali, spesso ricavate dai fossili. Le date ottenute sono stime: cambiano se cambiano i vincoli o le ipotesi sui tassi di evoluzione.
Un’analisi pubblicata nel 2021, che integra anche informazioni relative ai trasferimenti genici orizzontali, sostiene un’origine archeana delle linee cianobatteriche considerate e della fotosintesi ossigenica. Altre ricostruzioni hanno ottenuto età più recenti per il gruppo corona, cioè l’ultimo antenato comune dei membri viventi studiati e i suoi discendenti.
Queste differenze richiedono di distinguere il gruppo corona dalla linea ancestrale che lo precede. Una capacità metabolica può essersi sviluppata lungo quella linea prima della diversificazione conservata negli organismi attuali. Perciò datare una ramificazione non equivale automaticamente a datare l’invenzione del metabolismo.
Il confronto fra studi serve anche a riconoscere dove si concentra l’incertezza: nella collocazione di un fossile, nella ricostruzione delle parentele o nel modello temporale adottato.
Una produzione locale precede una trasformazione planetaria
L’ossigeno liberato da una comunità può essere consumato da reazioni e attività biologiche prima di accumularsi nell’ambiente. Per trasformare l’atmosfera conta il bilancio fra produzione e consumo su tempi lunghi. L’esistenza del metabolismo e la sua impronta planetaria devono quindi essere ricostruite separatamente.
Il Grande Evento Ossidativo, generalmente collocato intorno a 2,4 miliardi di anni fa, riguarda la transizione atmosferica. Anche questa trasformazione ebbe una dinamica articolata. Uno studio del 2024, dedicato a rocce sudafricane intorno a 2,3 miliardi di anni fa, ha collegato indicatori marini e atmosferici, ricostruendo variazioni dell’ossigenazione e ritorni a condizioni anossiche.
Il quadro non autorizza a immaginare un giorno in cui l’intero oceano e tutta l’atmosfera divennero improvvisamente ossigenati. Mostra invece quanto sia necessario precisare la scala spaziale e temporale di ogni evidenza.
La comparsa della fotosintesi ossigenica emerge così dall’incrocio di testimonianze che vincolano aspetti diversi della storia. I fossili documentano caratteri biologici già esistenti; la geochimica ricostruisce condizioni ambientali; gli orologi molecolari stimano divergenze evolutive. Rimane aperta la data precisa della prima capacità di ossidare l’acqua. Il progresso consiste nel restringere le ricostruzioni compatibili con le prove, mantenendo distinta ciascuna osservazione dall’interpretazione che ne deriva.