Due ricerche che interrogano lo stesso passato
Un laboratorio ottiene molecole utili alla costruzione dell’RNA. Un gruppo di biologi confronta genomi e ricostruisce le caratteristiche di un antenato remoto. Entrambe le ricerche riguardano la storia iniziale della vita, ma i loro risultati rispondono a domande differenti. La prima indaga come possano formarsi componenti e funzioni biologiche; la seconda cerca quali caratteri fossero presenti in una genealogia già avviata.
L’origine della vita riguarda l’emergere di sistemi capaci di organizzarsi, trasmettere variazioni ereditarie ed evolvere. L.U.C.A. riguarda invece l’ascendenza comune della vita cellulare conosciuta. La distinzione diventa utile quando permette di capire che cosa dimostra un esperimento, quali conclusioni sostiene un confronto molecolare e quali passaggi restano da spiegare.
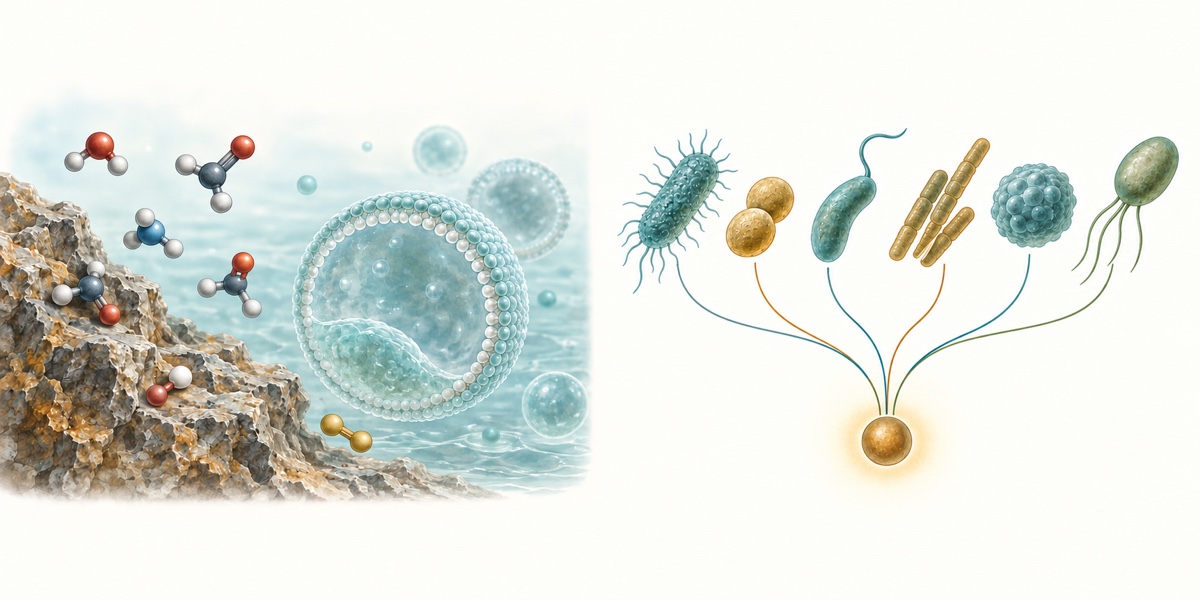
Il processo d’origine e il riferimento genealogico
L’abiogenesi non deve essere immaginata necessariamente come un istante nel quale tutte le proprietà della vita comparvero insieme. Le ricerche esaminano passaggi diversi: produzione di molecole, formazione di compartimenti, catalisi, disponibilità di energia, replicazione ed ereditarietà. La loro integrazione costituisce un problema ulteriore rispetto alla realizzazione di ciascuna funzione.
L.U.C.A., l’ultimo antenato comune universale, è individuato risalendo dalle linee cellulari attuali. I suoi caratteri sono inferiti attraverso confronti e modelli. Le ricostruzioni lo collocano in una storia evolutiva nella quale importanti funzioni erano già emerse: attribuirgli un apparato molecolare non equivale a spiegare come quell’apparato sia nato.
La differenza riguarda anche il campionamento. Le cellule attuali conservano tracce delle discendenze sopravvissute; non rappresentano un inventario completo di ogni sistema replicativo esistito. Dall’ascendenza condivisa non si ricava automaticamente quante linee siano scomparse, né quante volte processi d’origine possano essere iniziati.
Produrre un componente: che cosa dimostra la chimica
Nel 2009 Matthew Powner e collaboratori presentarono un percorso sperimentale per ottenere ribonucleotidi pirimidinici attivati attraverso intermedi chimici motivati nel contesto prebiotico. Il risultato affrontava una difficoltà precisa: rendere accessibili componenti dell’RNA mediante una sequenza di reazioni. La presenza di quei prodotti non dimostrava però l’esistenza di una cellula o di un sistema ereditario autonomo.
Nel 2015 Bhavesh Patel e collaboratori mostrarono che precursori di nucleotidi, amminoacidi e lipidi potevano derivare da una chimica comune basata su cianuro di idrogeno e suoi derivati. Alcuni passaggi erano alimentati dalla luce ultravioletta. La ricerca collegava classi di molecole spesso studiate separatamente; rimaneva da stabilire come i prodotti potessero essere concentrati, conservati e integrati in un’organizzazione persistente.
Questi esperimenti permettono di sostituire una possibilità generica con condizioni specifiche: reagenti, temperatura, acidità, energia, durata e prodotti misurabili. La ricostruzione storica richiede un controllo aggiuntivo: occorre motivare la disponibilità di quelle condizioni sulla Terra primitiva e la loro compatibilità reciproca.
Dai componenti alla replicazione
Un passaggio diverso fu studiato nel 2009 da Tracey Lincoln e Gerald Joyce. Nel loro sistema, due enzimi a RNA catalizzavano reciprocamente la propria formazione a partire da substrati preparati. Si osservavano amplificazione, competizione e selezione fra varianti. Il tempo di raddoppio era di circa un’ora nelle condizioni sperimentali.
Quel numero descrive la dinamica del sistema costruito, non il tempo necessario alla comparsa della vita. I componenti iniziali, il rifornimento dei substrati e le condizioni controllate appartengono al risultato e devono essere dichiarati. L’esperimento rende studiabile una funzione ereditaria; non identifica direttamente una popolazione vissuta sulla Terra primitiva.
Nel 2025 Saroj Rout e collaboratori hanno esaminato un ulteriore collegamento: alcuni amminoacidi favoriscono la formazione di catene di RNA da nucleotidi ciclici in condizioni alcaline con asciugamento. Nei protocolli descritti, le miscele erano incubate per 20 ore a temperatura ambiente; l’aumento della copolimerizzazione poteva superare cento volte quello del confronto sperimentale. È una misura di efficacia chimica nelle condizioni studiate, non una probabilità di abiogenesi.
Il contributo di questi modelli consiste nel rendere misurabili passaggi circoscritti. Una molecola prodotta, una catena allungata e un sistema che trasmette variazioni rappresentano risultati differenti, anche quando possono entrare nella stessa ipotesi evolutiva.
Che cosa aggiunge la ricostruzione di L.U.C.A.
La ricerca genealogica parte da un altro insieme di dati: sequenze, strutture e funzioni delle cellule attuali. I modelli cercano di distinguere l’eredità ancestrale da innovazioni, perdite e trasferimenti successivi. Il loro risultato è una ricostruzione condizionata dai dati e dalle assunzioni, non un organismo recuperato fisicamente.
Lo studio pubblicato nel 2024 da Edmund Moody e collaboratori propone un L.U.C.A. vissuto circa 4,2 miliardi di anni fa e dotato di un’organizzazione cellulare già complessa. Per la domanda sull’origine conta soprattutto il significato della stima: essa riguarda il riferimento ancestrale ricostruito, non la data in cui comparvero i primi sistemi viventi.
Attribuire una funzione a L.U.C.A. stabilisce che, secondo quel modello, la sua storia era già iniziata entro quella fase. Non determina quanti intermedi siano stati necessari, quale ambiente abbia ospitato ogni passaggio o quanto tempo sia trascorso prima. Anche la presenza ricostruita di una via metabolica non basta a dimostrare che essa sia nata nello stesso ambiente in cui avrebbe operato l’antenato.
Il collegamento da costruire fra esperimento e storia
Immaginiamo che un esperimento produca una molecola indispensabile a una funzione attribuita a L.U.C.A. Per collegare i due risultati occorre spiegare come quella molecola potesse accumularsi, partecipare a reazioni coordinate ed essere inserita in un sistema che trasmetteva caratteri. La corrispondenza fra prodotto e funzione è un indizio da sviluppare, non un’intera storia già dimostrata.
La verifica coinvolge più discipline. La chimica misura reazioni e rese; la geologia delimita gli ambienti plausibili; la biologia studia mantenimento, replicazione ed evoluzione; la statistica valuta quanto una ricostruzione dipenda dal campionamento e dal modello. Il raccordo fra questi livelli richiede condizioni compatibili, non soltanto risultati favorevoli ottenuti separatamente.
Anche la confutazione deve riguardare una proposta precisa. Se si sostiene che un amminoacido favorisca una certa reazione, esperimenti replicati con controlli adeguati devono ritrovare l’effetto. La sua assenza riproducibile metterebbe in discussione quel meccanismo nelle condizioni dichiarate. Non cancellerebbe automaticamente tutte le altre ipotesi sull’origine della vita o le evidenze di ascendenza comune.
Ciò che rimane aperto
Le osservazioni sperimentali documentano trasformazioni reali; i modelli ne valutano la pertinenza prebiotica e ricostruiscono stati ancestrali; gli scenari storici tentano di collegare questi risultati. Restano aperti l’integrazione delle funzioni, la successione dei passaggi, gli ambienti effettivi e la durata delle fasi precedenti a L.U.C.A.
Separare le due domande rende possibile metterle in relazione con maggiore precisione. Gli esperimenti cercano percorsi attraverso i quali certe proprietà biologiche possano emergere. L.U.C.A. fornisce un riferimento genealogico per valutare quali proprietà l’evoluzione aveva già acquisito. Il lavoro scientifico consiste nel costruire e verificare i collegamenti fra queste due direzioni di ricerca.