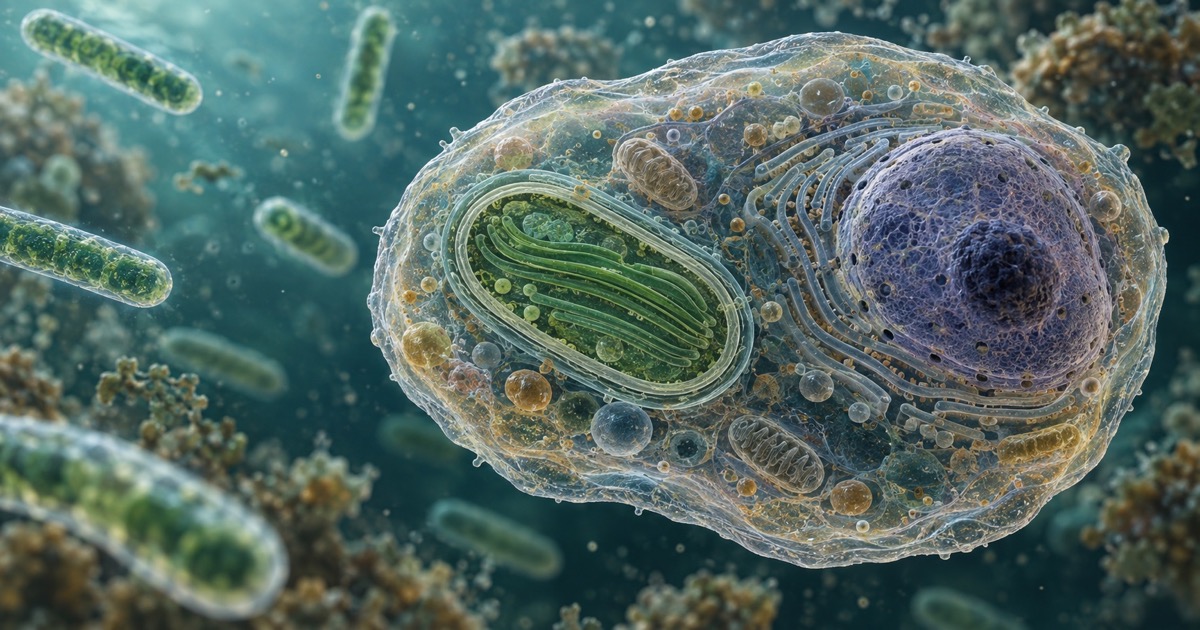
Nel nucleo di una cellula vegetale si trovano geni di ascendenza cianobatterica; le proteine che essi producono possono essere inviate al plastidio. Questa separazione fra il luogo in cui risiede un gene e quello in cui opera il suo prodotto conserva una conseguenza concreta dell'endosimbiosi: l'antico batterio è diventato parte di un sistema cellulare che distribuisce le proprie funzioni fra compartimenti.
Per risalire al progenitore dei plastidi occorre affrontare due domande collegate. Quale ramo dei Cyanobacteria ne conserva i parenti più prossimi? E quali trasformazioni permettono a un ospite di mantenere un organello derivato da un'altra cellula? La prima domanda riguarda la genealogia; la seconda l'integrazione funzionale.
Il progenitore si cerca nelle genealogie delle sequenze
I plastidi degli Archaeplastida, il gruppo che comprende glaucophyte, alghe rosse e linea verde, conservano genomi derivati dal simbionte. Anche il nucleo contiene geni trasferiti durante la storia endosimbiotica. Questi due archivi permettono confronti complementari con i genomi dei cianobatteri viventi.
Nel 2017 Ponce-Toledo e collaboratori confrontarono proteine plastidiali, RNA ribosomiali e proteine di ascendenza cianobatterica codificate nel nucleo. Le analisi recuperarono una parentela stretta con Gloeomargarita lithophora, appartenente ai Gloeomargaritales. La concordanza fra insiemi di sequenze diversi rafforzava la ricostruzione.
Il risultato identifica un parente vivente utile al confronto, non il batterio che partecipò all'endosimbiosi. La linea di Gloeomargarita e quella dei plastidi hanno continuato a evolvere separatamente dopo la loro divergenza. Le caratteristiche della specie moderna non possono quindi essere attribuite integralmente al progenitore.
Un campionamento più ampio mette alla prova la parentela
Nel 2026 Shrestha e collaboratori ampliarono il quadro utilizzando sequenze plastidiali ricostruite da metagenomi ambientali. Lo studio raccolse 1.027 sequenze plastidiali, comprese 300 nuove sequenze di plastidi precedentemente non sequenziati. Con campionamenti e insiemi di marcatori differenti, il ramo dei plastidi degli Archaeplastida risultò vicino ai Gloeomargaritales.
L'accordo con la ricostruzione precedente è rilevante perché molti microrganismi non vengono coltivati in laboratorio. I genomi ambientali permettono di includere linee che altrimenti resterebbero fuori dal confronto. L'ampliamento del campione non restituisce un antenato estinto, ma verifica se una relazione sopravvive all'introduzione di nuove diversità.
Le ricostruzioni devono inoltre controllare differenze nella velocità di evoluzione e nella composizione delle sequenze. Due rami possono apparire vicini per caratteristiche convergenti. Per questo il numero di somiglianze grezze non sostituisce un'analisi filogenetica: conta la storia compatibile con i dati e con il modello adottato.
La perdita di un gene e il suo trasferimento sono eventi diversi
Durante l'integrazione, il genoma del simbionte può perdere geni divenuti superflui oppure funzioni compensate dall'ospite. Altri geni vengono trasferiti al nucleo. Una riduzione del genoma, da sola, non permette di stabilire quale dei due processi abbia riguardato ogni funzione.
Il trasferimento fisico del DNA non garantisce inoltre l'espressione utile del gene. Nel nucleo, la sequenza deve essere compatibile con i sistemi eucariotici che producono e maturano l'RNA. Se la proteina serve dentro il plastidio, occorre anche un percorso che la riporti in quel compartimento.
Il passaggio può essere descritto attraverso requisiti distinti: incorporazione del DNA nel genoma nucleare, espressione, indirizzamento del prodotto e mantenimento della funzione. Non rappresentano necessariamente una successione identica per tutti i geni; definiscono ciò che deve essere verificato per parlare di trasferimento funzionale.
Un esperimento separa il movimento del DNA dall'attivazione
Stegemann e Bock affrontarono nel 2006 il problema mediante un sistema sperimentale nel tabacco. Dopo il trasferimento di un segmento plastidiale al nucleo, selezionarono linee nelle quali un gene trasferito acquistava attività nel nuovo contesto genetico.
L'attivazione coinvolgeva riarrangiamenti che permettevano di utilizzare un promotore nucleare e sequenze adatte alla maturazione dell'RNA. Il lavoro mostrava così come un frammento proveniente dal plastidio potesse diventare un gene nucleare funzionale.
Si trattava di un sistema costruito e sottoposto a selezione in un organismo moderno. Dimostra la possibilità del meccanismo osservato; non misura direttamente il suo ritmo nel primo endosimbionte e non ricrea l'intera origine del plastidio. Il suo valore è rendere sperimentalmente distinguibili due eventi spesso riassunti nella stessa parola: trasferire e rendere funzionale.
Le proteine devono raggiungere il compartimento corretto
Nei cloroplasti della linea verde, molte proteine codificate nel nucleo vengono sintetizzate nel citosol come precursori con segnali di indirizzamento. I sistemi di importazione devono riconoscerle e consentire il loro attraversamento dell'involucro. Una funzione può essere controllata dal nucleo soltanto se il suo prodotto arriva dove è necessario.
I nomi TOC e TIC indicano apparati associati rispettivamente alla membrana esterna e a quella interna dell'involucro plastidiale. Il canale Toc75 appartiene alla superfamiglia Omp85, che comprende proteine delle membrane esterne batteriche. Questa parentela fornisce una traccia del riutilizzo di componenti preesistenti nella costruzione dell'interfaccia fra ospite e organello.
Le architetture e i componenti dell'importazione differiscono fra linee plastidiali. Il sistema di una pianta attuale offre un caso documentato di integrazione, non una rappresentazione completa dell'apparato ancestrale. Ricostruire l'origine richiede confrontare le componenti condivise e le successive specializzazioni.
Paulinella permette un confronto indipendente
Le specie fotosintetiche di Paulinella, appartenenti ai Rhizaria, possiedono un cromatoforo derivato da un'altra acquisizione cianobatterica. Il suo progenitore apparteneva a una linea affine al gruppo Synechococcus–Prochlorococcus, distinta da quella coinvolta nell'origine dei plastidi degli Archaeplastida.
Nel 2012 Nowack e Grossman studiarono proteine del cromatoforo codificate nel nucleo. Mostrarono che venivano prodotte nel citoplasma dell'ospite, raggiungevano il compartimento fotosintetico e partecipavano ai complessi funzionali. La localizzazione di PsaE anche nell'apparato di Golgi suggeriva il coinvolgimento del sistema endomembranoso nel suo trasporto.
Questo caso consente di riconoscere un requisito comune attraverso una storia indipendente: la collaborazione genetica deve essere accompagnata dal movimento delle proteine. Non dimostra che Paulinella ripercorra tutte le fasi attraversate dagli Archaeplastida. Mostra che l'acquisizione di un organello fotosintetico può stabilizzarsi attraverso soluzioni cellulari differenti.
L'eredità dell'organello può includere contributi ulteriori
Nel 2016 Nowack e collaboratori ricostruirono in Paulinella chromatophora acquisizioni di geni da diversi batteri. Alcuni di questi contributi compensavano funzioni mancanti nel genoma ridotto del cromatoforo. La trasformazione non coinvolgeva quindi esclusivamente il trasferimento dal simbionte originale.
Il risultato chiarisce perché l'ascendenza di un organello e la provenienza di tutte le proteine che lo sostengono non siano la stessa domanda. La genealogia del compartimento può essere riconoscibile mentre il suo funzionamento dipende da un insieme di contributi genetici. Ogni attribuzione richiede il confronto delle singole famiglie di geni.
La parentela è meglio definita dell'incontro iniziale
La vicinanza dei plastidi ai Gloeomargaritales delimita la ricerca del progenitore, ma non stabilisce da sola l'identità dell'ospite, il luogo dell'acquisizione o la successione completa dei cambiamenti. L'associazione delle linee moderne affini con ambienti non marini sostiene scenari d'acqua dolce; resta un'inferenza ecologica, non l'osservazione del luogo dell'endosimbiosi.
Il trasferimento genico e l'importazione proteica possono essere studiati sperimentalmente. La loro distribuzione fra organismi permette di ricostruire eredità e specializzazioni. Restano invece meno determinate le condizioni che resero stabile la prima associazione e il tempo necessario alla sua integrazione.
Il progenitore dei plastidi emerge dunque da una parentela molecolare; la trasformazione in organello emerge da dipendenze cellulari verificabili. Collegare questi livelli permette di capire come un'eredità cianobatterica abbia continuato a funzionare dentro gli eucarioti, pur cambiando il luogo dei geni, i percorsi delle proteine e il controllo delle funzioni.